

昆虫叮咬,植物有“感觉”?陈晓亚/万里研究团队合作最新《Nature》
 2026-11-13
 3976
植物没法逃跑,只能靠“听懂”害虫的动作来提前布防。刺吸式昆虫(绿蝽、飞虱、蚜虫)取食时,会把唾液里的消化酶注进植物组织——过去我们主要把这类酶看成“帮虫子吸营养的工具”。
2026年11月11日,中国科学院分子植物科学卓越创新中心陈晓亚院士团队联合万里研究团队在Nature 在线发表题为“A plant RNA-binding protein senses 2′,3′-cNMP produced by insect effectors”的研究论文,这项研究颠覆了这个视角:虫子注入的T2家族核糖核酸酶(如NVR1),其实是在植物体内“制造警报分子”。
机制链条可以拆成四步。
第一步,RNA被切成特殊碎片。NVR1偏好切割单链RNA的嘌呤与尿嘧啶之间,产物不是普通核苷酸,而是带2′,3′-环磷酸末端的寡核苷酸——2′,3′-cAMP、2′,3′-cGMP,以及腺苷-(3′→5′)-鸟苷2′,3′-环磷酸酯(ApG>p)。这类分子在细菌、人类里都是公认的免疫信号:人溶酶体RNaseT2产生的同类片段能被TLR8识别,触发先天免疫。
第二步,水稻的“传感器”接住信号。富含甘氨酸的RNA结合蛋白NIB1,N端有RRM结构域、C端有GRR区。它的RRM恰好能结合这些环磷酸核苷酸——注意,结合的不是普通RNA,而是带环磷酸末端的“碎片标记”。
第三步,相分离。配体结合后,NIB1发生液-液相分离,在细胞核内聚成凝集物。这一步很关键:分散的蛋白分子聚成“反应腔”,把信号从“点”放大成“面”。
第四步,招募核心调控因子EDS1。NIB1核凝集物把EDS1拉进来,激活下游防御——水杨酸积累、病程相关基因表达、细胞死亡调控,可能还和植物TIR结构域的核酸酶活性信号汇流。外源直接施加2′,3′-cAMP、2′,3′-cGMP或ApG>p,就足以引发NIB1与EDS1依赖的免疫反应,证明这套“分子→相分离→免疫”的因果链是可外源操控的。
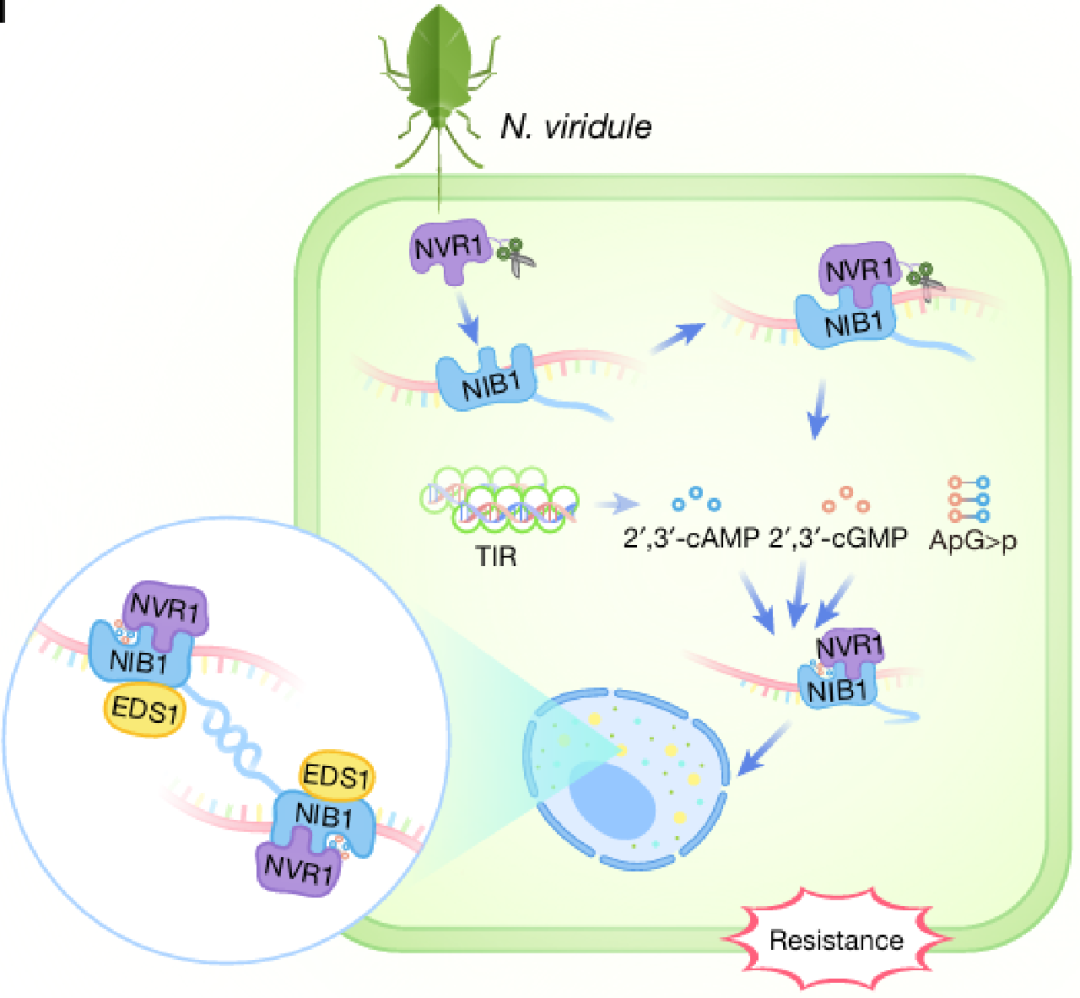
稻绿蝽分泌核酸酶激活植物抗虫免疫的机制模式图(图源自Nature )
概念突破有三层:
第一,植物首次被证明能“感知”RNase切出来的第二信使。过去植物免疫的经典模型是识别微生物模式(PAMPs)或效应子(NLR-TIR-EDS1),这里出现一条更古老的通道:宿主自己的RNA被虫酶降解,产物反过来当DAMP报警。等于害虫的消化工具被植物“缴获”成了预警雷达。
第二,把“相分离”正式写进植物免疫的执行环节。NIB1不是单纯转录调控因子,而是靠相变把信号从胞质传到核内、从分子浓度转成空间组织。
第三,为TIR-EDS1网络补上一块拼图。植物TIR结构域本身有核酸酶活性、能产2′,3′-cAMP/cGMP,但下游怎么被“读”一直不明;NIB1这类GRP可能正是那个读数器。人类TLR8-环核苷酸、植物NIB1-环核苷酸,构成跨界的“保守免疫语言”。
转化上想象空间直接:
抗虫育种:筛选NIB1等位变异、增强其配体结合或相分离能力,培育对刺吸式害虫更敏感的品种; 外源激发子:把2′,3′-cNMPs或ApG>p做成叶面喷施的“免疫疫苗”,在虫害爆发前预激活防御; 相分离调控:小分子调节NIB1凝聚体形成,避免过度免疫带来的生长代价。
当然边界要说清:目前主要在模式体系和水稻-稻绿蝽组合验证,田间复杂虫种、天敌昆虫是否被误伤、持续激活免疫是否压低产量,都需要系统评估;相分离在活体细胞里的定量、可逆性也要更精细的成像证据。
但方向已经清楚:植物抗虫不一定要等被咬出伤口才反应,它可以先听懂虫子的“消化声”。
参考消息:
https://www.nature.com/articles/s41586-026-11259-z